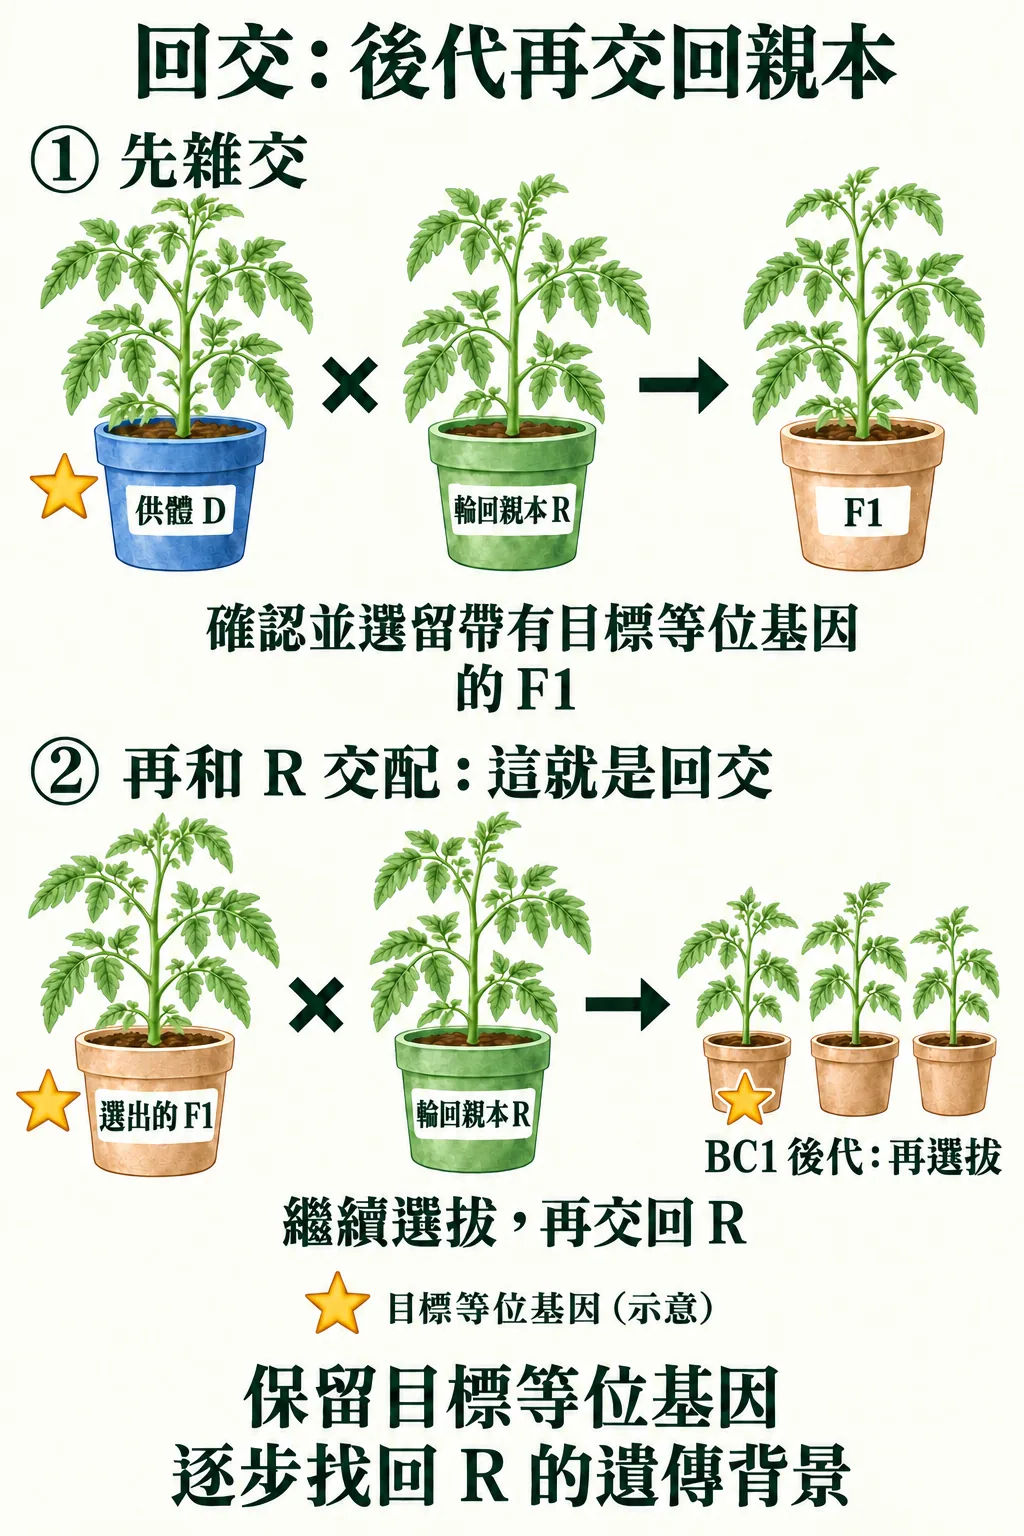
回交可以先理解成:先讓兩個親本雜交,再把選出的後代和指定親本之一交配。這個指定親本通常是育種者希望保留大部分整體表現的材料,稱為輪回親本(recurrent parent);另一個帶來目標性狀的材料,稱為供體親本(donor parent)。
回交常用在這種情況:一個品系的株型、成熟期或園藝表現大致符合目標,但缺少某個性狀;另一個親本剛好帶有這個性狀,其他方面卻不一定適合。育種者希望把目標性狀導入前者的遺傳背景,而不是把兩個親本所有差異都無限制地混在一起。這是育種目標,不是每株後代都會自動達成的保證。
先看懂:供體親本和輪回親本
供體親本是提供目標性狀或目標等位基因的一方。等位基因可以先想成「同一個基因位置上,可能存在的不同版本」。目標性狀可能是某種株型、成熟期、花色、品質特徵,或研究中要導入的其他遺傳差異;它不一定代表供體親本在所有方面都比較好。
輪回親本則是後續反覆拿來交配的那一方。它通常已經具備育種者想保留的多數性狀,例如整體株型、適應性或繁殖表現。這裡的「親本」不一定指一株家庭盆栽,也可能是品種、品系或一批遺傳背景相近的育種材料。想先了解親本、雜交和性狀的關係,可以參考親本、雜交和性狀是什麼關係?;物種、原種、品種、栽培品種和品系的差別,則可見物種、原種、品種、栽培品種和品系差在哪?。
回交和一般雜交、自交差在哪?
三個詞都和有性繁殖有關,但交配對象與目的不同:
- 一般雜交:讓兩個指定親本交配,先把雙方的遺傳材料放進同一批後代,之後再從後代選擇。育種和選拔的基本差異可見育種是什麼?選種和育種差在哪?。
- 自交:讓同一株植物的花粉和胚珠結合,或讓同一品系內的材料自我授粉;它不是把後代交回另一個親本。自花授粉和異花授粉的差別,可參考自花授粉和異花授粉差在哪?。
- 回交:先有雜交後代,再把選出的後代和指定親本交配。它仍然會產生遺傳重組,不是複製,也不是扦插或分株這種無性繁殖。
所以,「回」不是把同一對親本不加選擇地再配一次,而是把符合條件的後代交回某一個指定親本。實際交配可能需要人工授粉或其他育種管理,但本文只解釋概念,不把它當成家庭栽培操作指南;人工授粉的基本用途可另見人工授粉為什麼會被使用?。
為什麼要一直和輪回親本交配?
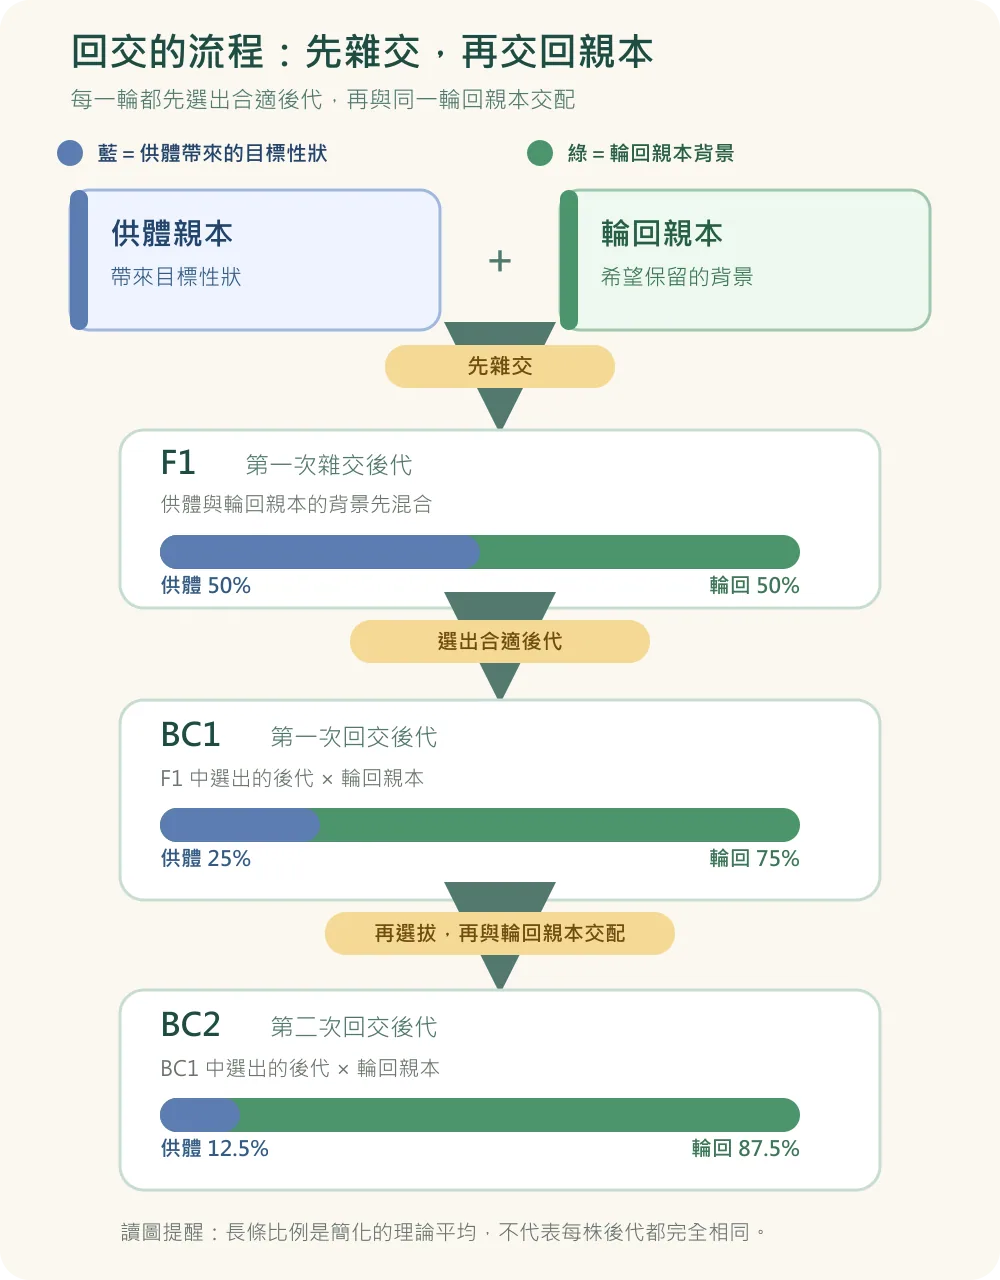
用一個假想例子來看:親本 R 的株型與果實表現符合育種目標,但缺少某個目標性狀;親本 D 帶有這個性狀,卻還有一些育種者不想保留的差異。先讓 D 和 R 雜交,得到的 F1 大約同時帶有兩邊的遺傳材料。
如果接著挑出帶有目標性狀的 F1,再讓它和 R 交配,後代平均上就會再得到一部分 R 的遺傳背景。從這一批 BC1 後代中繼續選拔,再和 R 交配,就得到 BC2。重複這個方向,目標是讓後代逐步接近 R,同時不要丟掉 D 帶來的目標性狀。
在親本為純合、基因沒有特殊連鎖、也先不考慮選拔偏差的簡化模型裡,輪回親本的期望平均比例大約是:
- F1:50% 來自輪回親本、50% 來自供體親本。
- BC1:75% 來自輪回親本、25% 來自供體親本。
- BC2:87.5% 來自輪回親本、12.5% 來自供體親本。
- BC3:93.75% 來自輪回親本、6.25% 來自供體親本。
這些數字是在幫助理解方向,不能當成每株植物的檢測報告。染色體會重組,個體之間會有差異;目標基因附近的供體片段也可能一起被帶入。這種不希望的鄰近片段跟著目標區域一起保留下來的現象,稱為連鎖拖帶(linkage drag)。
回交模擬:一輪輪交回 R,後代會變成什麼樣子?
以番茄為例,跟著藍色的供體片段,看互換、選拔與連鎖拖帶怎麼影響每一代。
供體親本 D(藍)帶目標等位基因 ★,兩套染色體上都有;輪回親本 R(綠)有育種者想保留的遺傳背景。F1 從雙方各得一套染色體,所以背景一半來自 R。這裡只畫 4 對染色體示意。
已開啟減少動態效果:選擇步驟會直接顯示該步驟的結果畫面。
模型說明與研究依據
這是依回交遺傳原理做的教學模擬,不是實際番茄育種的資料。
- 期望平均
在親本純合、不做選拔的簡化模型中,第 t 次回交後來自輪回親本的期望平均比例是 1 − (1/2)^(t+1):F1 50%、BC1 75%、BC2 87.5%、BC3 93.75%、BC4 約 96.9%。
- 染色體與互換
番茄有 12 對染色體,這裡只畫 4 對。番茄正常減數分裂中,同源染色體通常至少有一次互換,有助於正確分離。DNA 複製後,一對同源染色體共有四條染色分體(複製出的拷貝);一次互換只涉及其中兩條,因此傳入配子的那條可能沒有參與。畫面省略複製及四條染色分體的完整過程,右側四個配子是分別抽出的例子,不是同一次分裂的四個產物。模型只計算傳入配子的拷貝,允許零到三個換色點,依染色體長度隨機抽出,位置平均分布;這不是整對染色體的互換次數。研究顯示,番茄的互換多發生在常染色質(基因較多、較鬆散的區域),靠近著絲點(染色體上的收縮點)很少,同一條上的互換點也傾向彼此隔開,這些都沒有模擬。因為染色體少,個體差異和 ★ 所在染色體對整體比例的影響,看起來會比實際番茄大;背景選拔在後期的領先,也會比實際小。
- 選拔
每一代畫 8 株,這只是畫面的批次大小。前景選拔只留帶 ★ 的植株;背景選拔再從中挑來自 R 比例最高的一株。動畫直接看得到真實比例,實際育種只能靠 DNA 標記或性狀估計。只做前景選拔時,因為帶 ★ 就一定帶著旁邊的藍色片段,選出的植株常比不選拔的期望平均低一些。若某一代 8 株都沒帶 ★(機會約 1/256),模擬會重抽那一代。
- 連鎖拖帶
其他染色體上的藍色片段,每傳一代平均少一半;★ 旁邊的藍色只能靠剛好落在附近的互換切短,所以縮得慢很多。以一條約 100 cM(分摩根,遺傳圖的長度單位)的染色體估算,只做前景選拔時,到第 4 次回交,★ 周圍平均仍有約四成長度是藍色;到第 6 次仍約三分之一。番茄研究曾測得,從野生近緣種導入的抗病基因旁,保留的野生片段從約 4 cM 到 50 cM 以上不等。台灣農業研究文獻中也寫作「連鎖累贅」。
- 沒有畫出的部分
回交後通常還要自交或用其他方式固定目標等位基因,並在不同環境比較表現;這些屬於文章正文的範圍,不在模擬中。
F1、F2、BC1 代表什麼?
育種紀錄裡的字母和數字是在描述「這批材料怎麼來的」,不是品質分數:
- F1:兩個親本第一次雜交得到的第一代後代;
F來自 filial,意思是雜交後代世代。 - F2:F1 自交或 F1 互交後得到的下一代。在許多簡化例子裡,F2 會出現更多遺傳分離與性狀組合,但不代表比 F1「更好」。
- BC1:第一次回交後代,也就是雜交後代第一次和指定親本交配後形成的材料。
- BC2:第二次回交後代;通常表示 BC1 中選出的材料再次和同一輪回親本交配。
有些育種紀錄會寫成 BC1F1,表示第一次回交後形成族群的第一個後代世代;更長的記號如 BC1F2 或 BC2F2:4,則要依該作物或研究單位採用的命名系統解讀。初學者先抓住 BC1 是「第一次回交」即可,不要把它看成產品等級。
每一輪為什麼還要選拔?
回交不是把所有後代都不加分辨地拿去交配。每一輪通常至少要同時注意兩件事:
- 前景選拔:確認後代仍保有目標性狀或目標等位基因。
- 背景選拔:在保有目標性狀的材料中,找出整體遺傳背景、株型或其他重要表現較接近輪回親本者。
某些性狀可以直接觀察,有些則要等到特定發育階段,或用後代檢定、DNA 標記等方法輔助辨識。這些方法的作用是提高判斷效率,不代表只要有一個標記就能跳過田間或園藝性狀評估。回交完成後,通常仍要進行自交或其他固定方式,以及不同環境下的比較,才能知道材料是否真的符合育種目標。
回交不是精準複製
反覆使用輪回親本,確實能讓遺傳背景的理論平均值逐步靠近它,但不能說「回交幾次就會完全變成原本的品種」。原因包括:
- 回交後代仍會分離與重組,個體不會全部相同。
- 目標性狀附近可能有連鎖拖帶,供體的不希望片段不一定能立刻消失。
- 同時要導入很多性狀,或性狀受許多基因與環境共同影響時,回交不一定是最簡單的方法。
- 親本是否能正常交配、目標性狀如何遺傳、要做幾輪選拔,都會影響計畫。
因此,回交比較像「針對一個或少數缺口,逐步把材料拉回既有遺傳背景」的方法。它不是「讓植物變好」的保證,也不能只靠外觀就判定導入已經成功。
容易混淆的地方
- ✕ 回交就是把同一對親本再交配一次。
- ✓ 回交是把選出的雜交後代和指定親本交配;對象不是原封不動的兩個親本。
- ✕ BC1 代表比 F1 更高級。
- ✓ BC1 只表示第一次回交後代,描述的是育種歷史。
- ✕ BC1 的 75% 就代表每一株都有 75% 輪回親本背景。
- ✓ 75% 是簡化模型下的期望平均比例,個體會因重組與選拔而不同。
- ✕ 回交會把供體親本的其他基因全部清掉。
- ✓ 目標區域附近可能有連鎖拖帶,還需要選拔、檢定與試驗。
- ✕ 回交等於自交、扦插或複製。
- ✓ 回交是有性繁殖的一種育種策略,後代會重新組合遺傳材料。
常見問題
回交一定要用原本那一株親本嗎?
不一定。育種紀錄裡的輪回親本常是品種、品系或遺傳背景相近的一群材料,不必然指最初那一株植物。重要的是後續使用的材料符合育種計畫對輪回背景的定義。
F2 是不是比 F1 更好?
不是。F2 只是 F1 後面的世代,常因遺傳分離而出現更多差異;這些差異可能增加選拔機會,也可能帶來不希望的組合,不能用世代名稱直接判斷好壞。
回交要做幾次才算完成?
沒有適用所有植物的固定次數。需要幾輪,會受到供體與輪回親本的相似程度、目標性狀的遺傳方式、選拔工具、連鎖拖帶與後續試驗要求影響。理論比例只能幫助理解方向,不能直接決定某個育種計畫的代數。
為什麼回交後還要自交?
回交的主要作用是把整體遺傳背景拉回輪回親本;自交或其他固定方式則可能用來讓目標等位基因以需要的型態穩定下來,並讓育種者比較後代是否符合預定性狀。實際方法要看作物與性狀,不能只由名詞推定。
供體親本是不是比較差?
不一定。供體可能只是在某個目標性狀上有價值,輪回親本則是在另一組育種目標上較符合需要。供體與輪回親本是功能角色,不是好品種和壞品種的評分。
回交和基因工程是同一件事嗎?
不是。回交描述的是交配與選拔方式,供體材料可能來自自然變異、突變、近緣材料或其他育種來源。是否使用基因工程是另一個技術問題,不能只看「回交」這個詞判斷。
相關詞彙
- 回交(backcross / backcrossing):把雜交後代再和指定親本交配;
backcrossing也可指反覆回交的整套策略。 - 供體親本(donor parent):提供目標性狀或目標等位基因的親本。
- 輪回親本(recurrent parent):在後續世代中反覆使用、希望保留其遺傳背景的親本。
- 遺傳背景(genetic background):材料整體的遺傳組成,不等於單一性狀。
- 導入(introgression):透過雜交與回交,把某段遺傳材料帶入另一個遺傳背景。
- 連鎖拖帶(linkage drag):目標基因附近的不希望片段也跟著被帶入的情況。
- 標記輔助選拔(marker-assisted selection, MAS):利用 DNA 標記協助辨認帶有目標區域或較符合背景的材料。
查核與授權
參考資料與圖片來源
以下資料用於查核本文的植物學概念與園藝脈絡。
查看本文參考資料(17)
- openstax.org — 11 1 the process of meiosis
- iastate.pressbooks.pub — backcrossing
- iastate.pressbooks.pub — pedigree naming systems and symbols
- iastate.pressbooks.pub — marker assisted backcrossing
- passel2.unl.edu — 3
- passel2.unl.edu — glossary
- ams.usda.gov — Induced Mutagenesis.pdf
- ars.usda.gov — publication
- plants.ces.ncsu.edu — solanum lycopersicum
- pmc.ncbi.nlm.nih.gov — PMC1204794
- pmc.ncbi.nlm.nih.gov — PMC1569518
- doi.org — pp.16.01530
- doi.org — BF00305828
- pmc.ncbi.nlm.nih.gov — PMC3378239
- pmc.ncbi.nlm.nih.gov — PMC1206766
- pmc.ncbi.nlm.nih.gov — PMC8000504
- tari.gov.tw — 65 1 4.pdf
圖片來源與權利
- 植物筆記專案自製圖片 · 植物筆記專案自製,未使用第三方圖像授權 — 本站將自製SVG轉為 WebP 供網頁顯示。